ERTLNPs:递送与免疫激活二合一,一针注射在体内"造出"CAR-T
CAR-T 细胞免疫治疗疗效显著,但体外制备工艺复杂、成本高昂。2026年 Nature Materials 的一项研究开发出自带 T 细胞激活能力的纳米载体 ERTLNPs——无需靶向配体、无需体外细胞操作,全身给药即可在体内原位生成功能性 CAR-T,并在肺纤维化模型中验证了疗效。
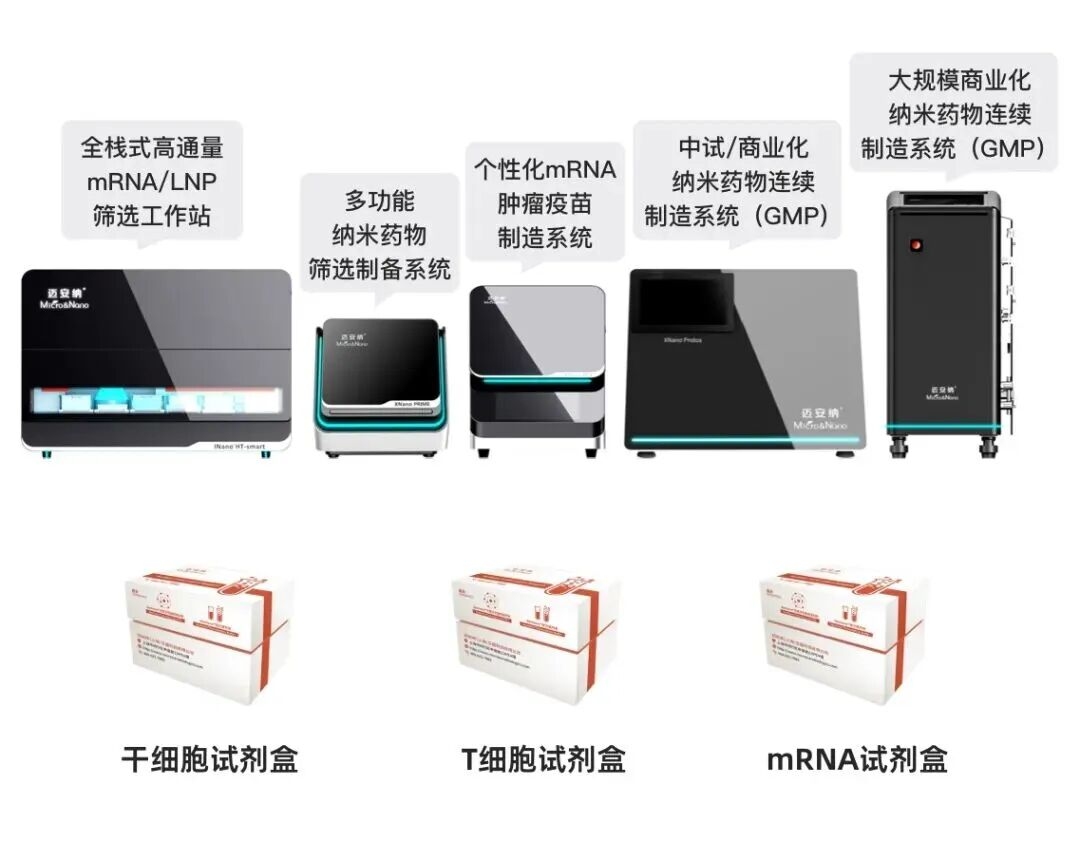
迈安纳微流控 XNano 系列设备与试剂盒,覆盖 mRNA/LNP 筛选与 GMP 级连续制造。
CAR-T 细胞免疫治疗在肿瘤治疗中已取得巨大成功,自 2017 年美国 FDA 批准首款 CAR-T 疗法以来,其临床价值已拓展至肿瘤以外的疾病领域。但体外制备路线仍受制于复杂工艺与高昂成本:需单采患者细胞,体外分离、基因工程化与扩增,质检合格后回输,高度依赖专业医疗中心。将编码 CAR 的 mRNA 直接递送至体内 T 细胞,有望绕开体外细胞操作。
现有递送体系短板明显:多数 LNP 主要靶向肝脏;抗 CD3 偶联 LNP 虽可靶向 T 细胞,却会导致 T 细胞耗竭;SORT LNP 与 CART 等无需靶配体修饰的载体转染效率良好,但体内 T 细胞的 mRNA 转染机制尚未被阐明。同时,T 细胞激活是增殖、分化与高效转染的前提,现有激活体系多依赖抗 CD3/CD28 磁珠,制备复杂、批次差异大,且基于 TCR 复合物的持续刺激常诱发 T 细胞功能障碍与耗竭。
为此,Cao 等人(Nature Materials, 2026)开发了无需任何靶向配体、自带 T 细胞激活能力的聚合物-脂质纳米颗粒 ERTLNPs,全身给药即可在体内完成 T 细胞 mRNA 转染与激活,原位生成功能性 CAR-T 细胞。
ERTLNPs 平台构建 Construction of the ERTLNPs platform
研究以对甲基苯磺酰精氨酸(RT)修饰的低聚乙烯亚胺(OEI-RT)为可电离聚合物,与 DSPC、DMG-PEG 及胆固醇共同组装形成 ERTLNPs。OEI-RT 是实现有效 mRNA 转染的关键组分;去除该组分后,静脉给药所致的功能性表达几乎可以忽略。不同氨基酸及对甲苯磺酰基修饰聚合物的横向比较显示,OEI-RT 对应的 ERTLNPs 具有更强的脾脏功能性表达——这种效果高度依赖精细的聚合物结构,而非简单增加正电荷即可获得。
配方筛选发现,DMG-PEG 质量占比为 20% 时表现最佳:主要器官的生物发光信号中,脾脏占 94.4%;作为对照,SM102 LNP 的表达则以肝脏为主。粒径约 180 nm、PDI 低于 0.3、mRNA 包封率高于 85%。提高 RT 接枝密度也能增强体内转染,45% 接枝组表现最优。值得注意的是,标记颗粒和 mRNA 在肝、脾均有蓄积,而最终翻译产物主要集中于脾脏——这提示颗粒进入哪个器官不等于 mRNA 在哪个器官有效表达。蛋白冠分析发现多种免疫相关蛋白富集,可能参与载体与脾脏免疫细胞的相互作用。
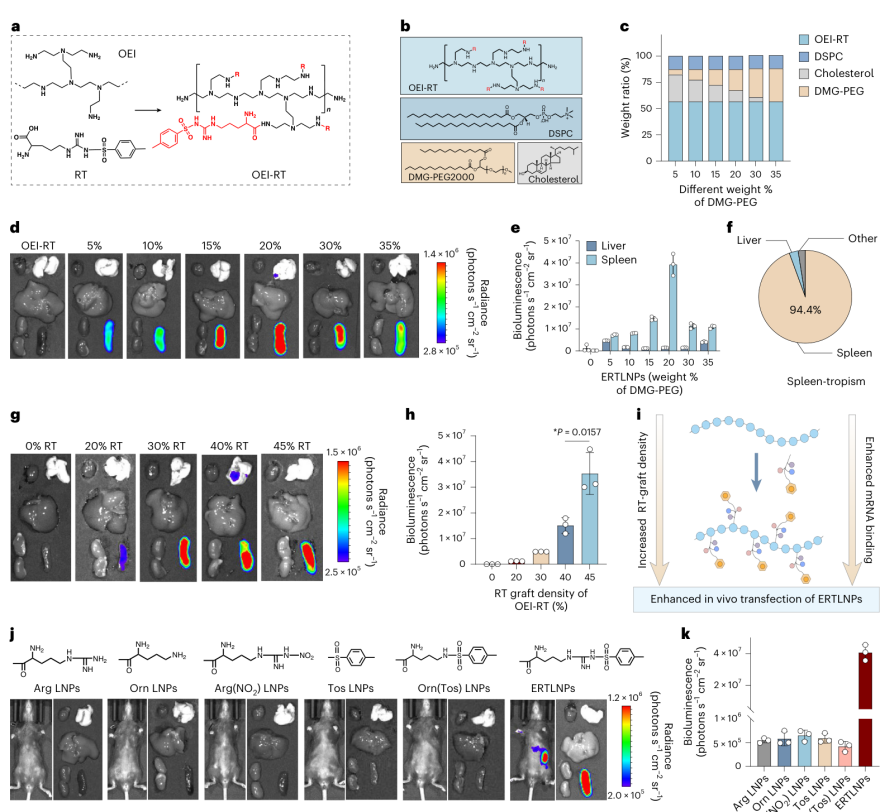
ERTLNPs 的构建与配方优化:OEI-RT 聚合物结构、DMG-PEG 比例筛选及体内脾脏优先表达。
无需靶向配体,优先转染 T 细胞 Ligand-free, T-cell-preferring transfection
向 mTmG 报告小鼠静脉注射负载 Cre-mRNA 的 ERTLNPs,48 小时后脾脏 T 细胞转染比例达 8.04%,高于 NK 细胞(3.46%)、巨噬细胞(4.13%)、树突状细胞(3.97%)和 B 细胞(0.34%),其中 CD8⁺ T 细胞更易被转染,外周血约 5% 的 T 细胞呈 GFP 阳性。
体外实验中,ERTLNPs 对 Jurkat 细胞的转染率接近 90%,对小鼠原代脾脏 T 细胞约为 20%,对人外周血单个核细胞(PBMC)最高达 50%。这些结果说明,载体无需抗体或其他靶向配体修饰,即可实现一定程度的 T 细胞优先功能性转染,为体内 CAR-T 生成提供递送基础。需要注意,人 PBMC 是混合细胞群,其整体转染比例并不等同于纯化人 T 细胞的转染率;从动物模型走向人源细胞应用,仍需人群验证。
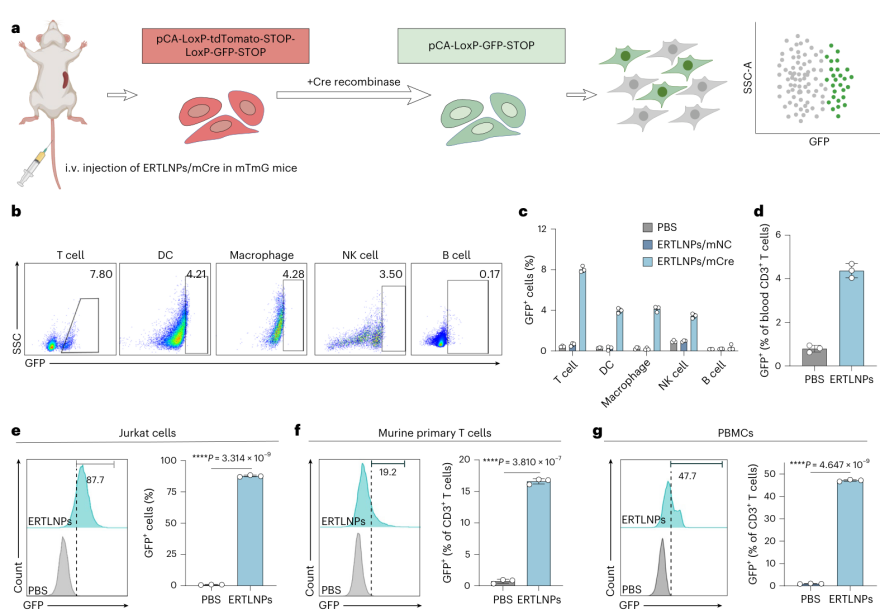
ERTLNPs 在 mTmG 小鼠体内及 Jurkat、原代 T 细胞、PBMC 中的 mRNA 转染表现。
"激活+转染"一步完成,耗竭标志物更低 One-step activation + transfection with lower exhaustion markers
ERTLNPs 与原代 T 细胞共孵育后,6 小时即可观察到激活标志物 CD69 上调,24 小时的激活水平与抗 CD3/CD28 刺激相当,并促进 Ki-67 表达、细胞增殖、细胞因子释放和脱颗粒。相比之下,MC3、SM102 及 ALC0315 等常见 LNP 几乎不能有效激活 T 细胞。实验中 CD69 的升高可持续观察至 48 小时;96 小时检测显示 Ki-67 相关增殖水平高于抗 CD3/CD28 刺激组。活化后的 T 细胞还出现 IL-2、IFN-γ 和 TNF-α 释放增加,提示该过程不仅改变表面标志物,也伴随效应功能增强。
更重要的是,ERTLNPs 处理组的 PD-1、TIM-3 等耗竭相关标志物显著低于抗 CD3/CD28 刺激组;小鼠体内也观察到激活与增殖增强,而 PD-1 阳性 T 细胞比例未明显上升。研究还证明,无需先用磁珠预激活 T 细胞,直接共孵育 ERTLNPs/mRNA 即可实现一步法"激活+转染"。mTOR 抑制剂会同时降低激活和转染效率,二者呈较强正相关(r = 0.892)。
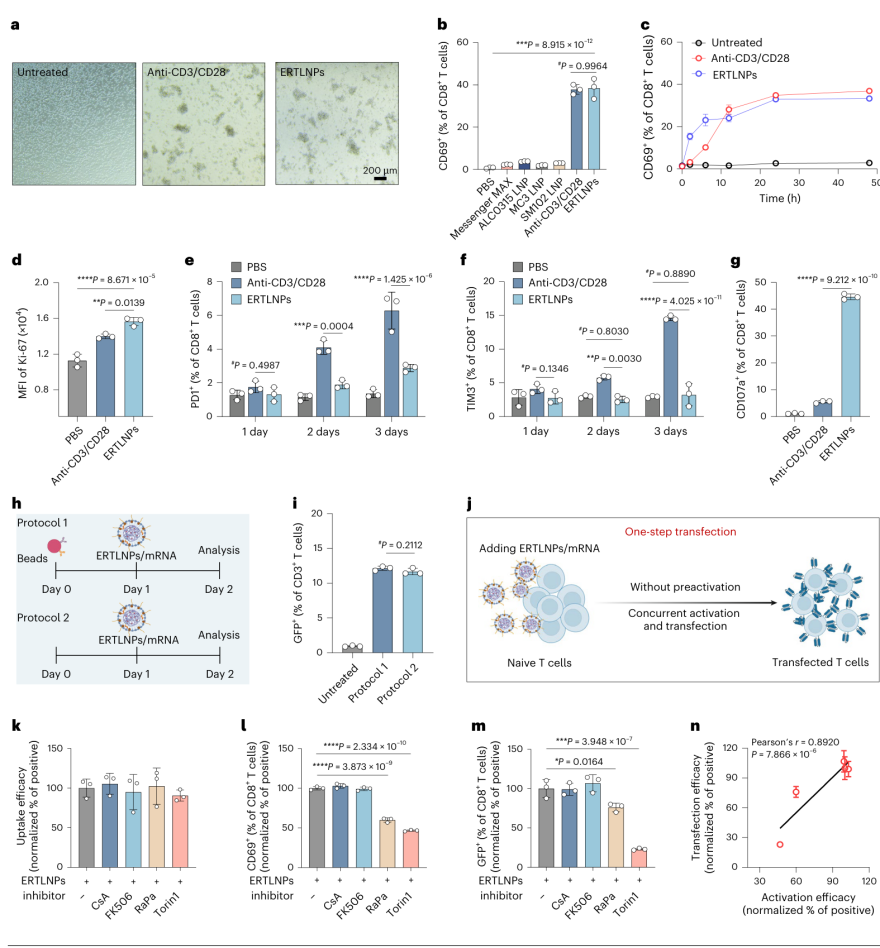
ERTLNPs 促进 T 细胞激活与增殖,同时维持较低的耗竭标志物水平;激活与转染效率高度相关。
双通路激活机制:IGF-1R 与 TM4SF5 Dual activation mechanism: IGF-1R and TM4SF5
ERTLNPs 并非单纯的 mRNA 运输工具,其结构还可直接激活 T 细胞。机制研究发现两条并行通路:其一,载体作用于 T 细胞膜表面 IGF-1R,启动 PI3K/AKT/mTOR 信号;IGF-1R 抑制剂 AXL1717 可削减 CD69、CD107a 上调及相关蛋白磷酸化。对 CD3、CD4、CD8α、CD28、TCR 及多种 Toll 样受体进行阻断时,并未观察到与 IGF-1R 抑制相近的效果,支持其并非主要通过 TCR 信号来完成激活。
其二,ERTLNPs 主要经巨胞饮进入细胞。在溶酶体内由溶酶体氨基酸感知蛋白 TM4SF5 识别其锚定结构,促进 TCR/CD3 内吞、缓解抑制信号;TM4SF5 敲低削弱了聚集体-溶酶体结构形成与 TCR/CD3 内吞,阻断 IGF-1R 与 TM4SF5 则可协同抑制信号传导。两条通路共同汇聚于 mTOR,驱动 T 细胞激活、代谢编程与后续转染,而不必依赖传统 TCR 刺激。分子对接、等温滴定量热及 Tm4sf5 敲低结果进一步支持 OEI-RT 与 TM4SF5 的相互作用。
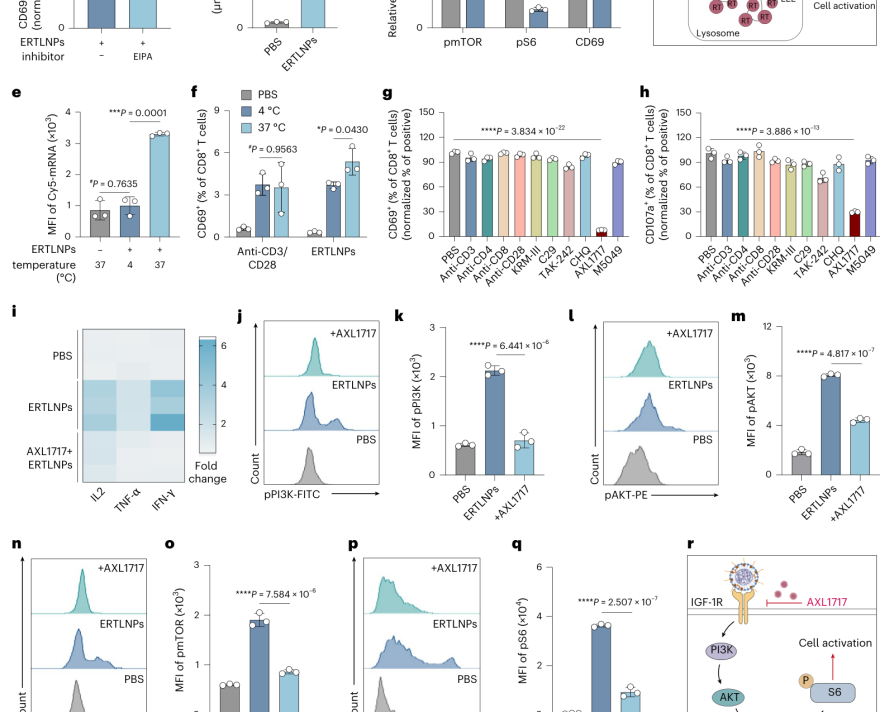
IGF-1R 膜表面信号与 TM4SF5 溶酶体感知共同激活 mTOR;阻断后激活与转染同步下降。
代谢重编程与记忆相关表型 Metabolic reprogramming and memory-associated phenotype
RNA-seq 显示,ERTLNPs 可广泛调节 T 细胞激活、糖酵解及 PI3K/AKT/mTOR 相关基因。功能实验进一步证实:处理后 T 细胞葡萄糖摄取、ATP 水平及 GLUT1、HIF-1α 表达增加,提示细胞代谢转向支持活化与增殖的状态;抑制 mTOR 可逆转相关变化。其中 ERTLNPs 组有 2597 个基因上调、2964 个下调,GO 和 KEGG 分析富集于细胞增殖、蛋白磷酸化、糖酵解以及 HIF-1 信号等通路。
与抗 CD3/CD28 刺激相比,ERTLNPs 未显著诱导 Pdcd1、Ctla4、Lag3 等耗竭相关转录程序,反而上调了 Tcf7 等记忆 T 细胞相关基因。这为其"有效激活而较少出现耗竭表型"的现象提供了转录层面的支持。但需要指出,转录证据虽提示其可能保留更有利的分化特征,基因表达并不能直接代表细胞在体内具有持久的记忆功能或更好的长期疗效。
体内原位生成具有功能的 FAP CAR-T In vivo generation of functional FAP CAR-T
为验证治疗潜力,研究选用在活化成纤维细胞中高表达的成纤维细胞活化蛋白(FAP)作为靶点,向 ERTLNPs 装载编码 FAP CAR 的 mRNA(mFC)。体外培养 24 小时后,约 25% 的原代 CD3⁺ T 细胞表达 FAP CAR;全身给药后,约 8% 的脾脏 T 细胞成为 CAR 阳性,而其他主要免疫细胞的 CAR 阳性率均低于 2%。研究构建的 FAP CAR 胞内信号域含 CD28 与 CD3ζ,并用体外转录方式获得对应 mRNA。
由于采用非整合型 mRNA,CAR 表达呈瞬时变化:脾脏 CAR 阳性 T 细胞由第 1 天的 7.7% 降至第 4 天的 3.9%。这一特性意味着维持疗效可能需要重复给药,但也可限制持续 CAR 表达。功能实验显示,这些 CAR-T 细胞可特异性杀伤 FAP 阳性靶细胞,并释放 IL-2、TNF-α 和 IFN-γ;在特定效靶比下,杀伤表现与慢病毒制备的 CAR-T 相当。
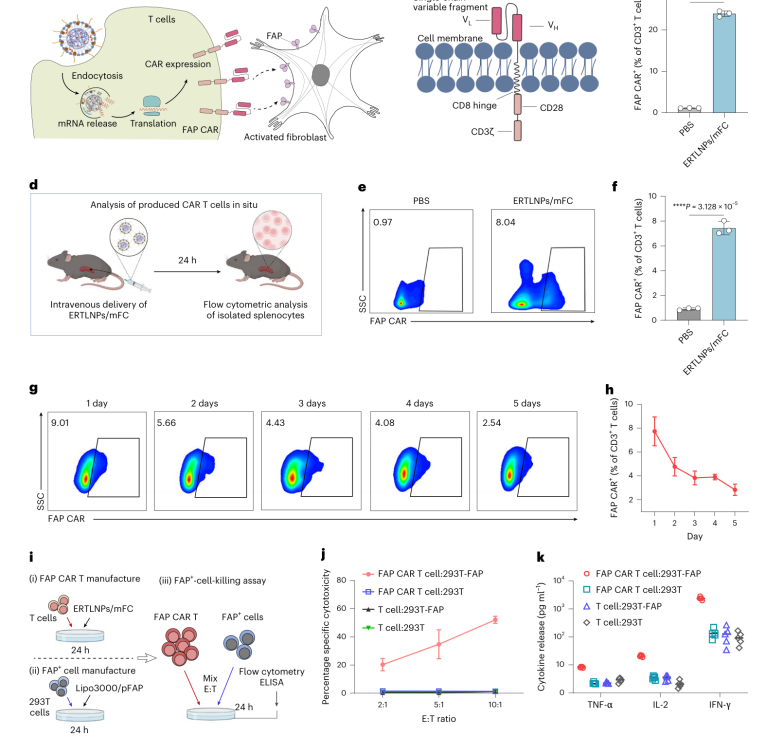
FAP CAR 的体内外生成、瞬时表达动力学及对 FAP⁺ 靶细胞的特异性杀伤与细胞因子释放。
肺纤维化模型中的治疗验证 Therapeutic validation in pulmonary fibrosis
在特发性肺纤维化患者公开数据与博来霉素诱导的小鼠模型中,研究观察到纤维化组织 FAP 表达升高,体内生成的 FAP CAR-T 能够进入纤维化肺病灶,接近 FAP 阳性成纤维细胞,为靶向清除病理基质细胞提供依据。相关人群数据包含 60 例患者和 40 例正常肺组织样本;研究还利用免疫荧光和体外 TGF-β1 活化成纤维细胞模型,补充验证了 FAP 与病理性纤维化微环境的关联。
治疗实验中,小鼠每 3 天静脉注射一次 ERTLNPs/mFC,共 4 次,并设置非靶向对照。与对照组相比,治疗组肺组织重量指数下降,肺泡灌洗液总蛋白与胶原含量下降,FAP 阳性成纤维细胞和巨噬细胞减少;组织染色显示胶原沉积降低、肺泡结构改善,同时 TGF-β1、IL-4、IL-13 等促纤维化因子下调。在该动物模型与给药条件下,ERTLNPs/mFC 在多项纤维化指标上表现明显改善,且主要肝肾生化指标与健康对照组相近。这些结果支持体内 CAR-T 用于抗纤维化治疗的可行性,但不能直接推断人体临床疗效。
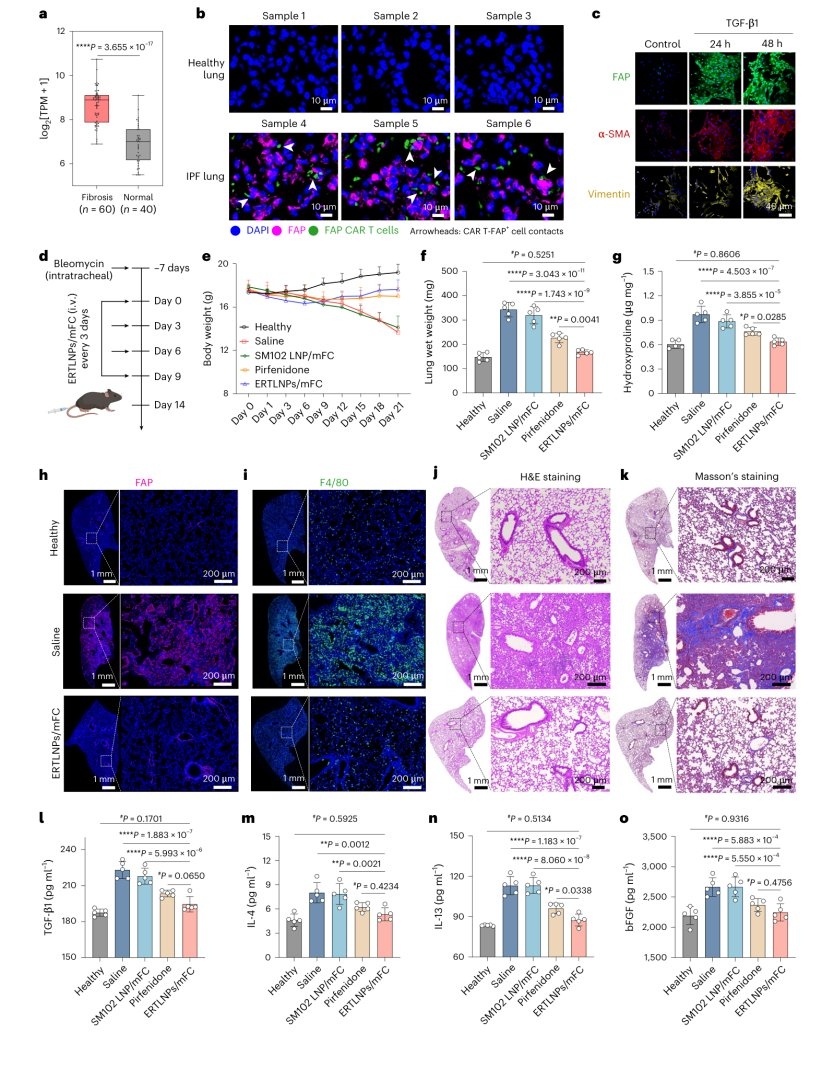
ERTLNPs/mFC 在博来霉素诱导的肺纤维化模型中减轻胶原沉积、改善肺泡结构并下调促纤维化因子。
拓展模型与初步安全性 Extended models and preliminary safety
研究在肝纤维化及原位胰腺癌模型中也观察到治疗获益。重复给药实验中,与抗 CD3 抗体对照组比,ERTLNPs 未明显升高 T 细胞 PD-1 水平;急性给药后的炎症因子、主要器官组织学及人全血补体激活相关检测也未见显著异常。需要强调,这些仅是研究条件下的初步安全结果,尚不能替代长期重复给药、组织脱靶及系统毒理评价。
这项研究的关键创新,是把 mRNA 递送与 T 细胞激活整合到同一种聚合物-LNP 中:无需抗体偶联,便可优先转染脾脏 T 细胞;通过 IGF-1R 和 TM4SF5 双通路激活 mTOR 信号,在较低耗竭表型下实现 T 细胞工程化;进一步在小鼠体内生成 FAP CAR-T,并验证其在纤维化及肿瘤模型中的治疗潜力。
走向临床仍有几重问题需要解决:FAP 并非疾病组织独有,在正常组织修复中也发挥作用,需评估脱靶风险;mRNA 表达短暂,可能需要重复给药,长期免疫刺激和器官毒性有待明确;人源 T 细胞的转染率、激活与治疗效果也需进一步验证。总体而言,ERTLNPs 为可控、非病毒的体内 CAR-T 工程化提供了一条值得关注的新路径。
采用先进纯化技术和严格的质量控制流程,迈安纳合成 mRNA 纯度超过 90%,保留了 RNA 分子的完整性和功能活性,为高效翻译奠定基础。体外 293T 细胞转染与小鼠体内活体成像均验证了其高表达性能。
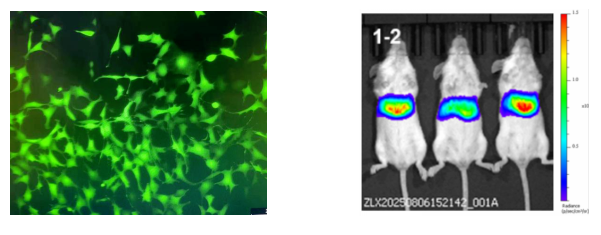
体外 293T 细胞转染(左)与小鼠体内活体成像表达(右)。
circRNA 方面,采用先进的环化策略,环化率 > 80%、纯度 > 90%,较 mRNA 稳定性更好、半衰期更长,转染后蛋白表达水平逐渐升高并可长期维持。另提供加帽(加帽率 > 90%)、Poly(A) 加尾优化及核苷酸修饰、定制化序列设计等多种修饰选项,覆盖蛋白替代疗法、肿瘤疫苗和 CAR-T 细胞治疗等应用。
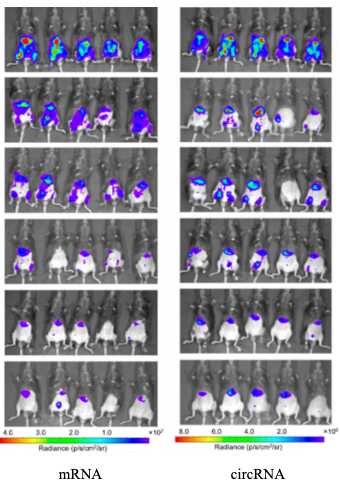
mRNA 与 circRNA 小鼠体内蛋白表达稳定性对比。
从 mRNA 设计、合成到递送系统适配,迈安纳提供全流程技术支持与咨询,帮助您优化实验方案并加速研发进程。